


VHH抗体筛选效率低?拆解噬菌体淘选的8个关键参数
- 2026-09-14
- 20
VHH是源自骆驼科动物重链抗体的可变区单域抗体,分子量大约在13-15kDa,由3个互补决定区(Complementarity Determining Region,CDR)中CDR3 loop 对抗原结合贡献最大[1]。这一独特的结构特征赋予VHH抗体优异的稳定性,使其在噬菌体库筛选中能够耐受极端pH和高温、承受更严苛的洗涤条件,尤其适合全细胞表面抗原的生物淘选。
在VHH抗体的发现流程中,噬菌体库筛选是最为核心的技术平台之一。然而,生物淘选过程中大量可调控的参数往往被“一刀切”地执行,导致筛选效率低下。本文将VHH抗体文库的淘选流程拆解为8个可量化的关键参数,系统分析每个参数在噬菌体库筛选中的调控策略,帮助研究人员在生物淘选中获得更高比例的功能性VHH抗体阳性克隆。
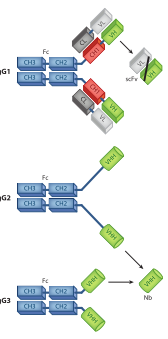
图1:VHH结构示意图[1]
一、抗原包被密度
1、问题本质
抗原在固相载体上的包被密度,直接决定VHH可及的表位数量与类型。密度过高可能会导致表位遮蔽;密度过低则会丢失低丰度高亲和力的克隆。并且VHH因其体积小、表位接触模式独特,所以与标准抗体在抗原密度需求上存在差异。
2、决策逻辑
表1:抗原包被密度建议
轮次 | 策略 | 密度建议 |
第1轮 | 高密度 | 5-10μg/mL(或 100–200 pmol/孔) |
后轮 | 逐轮递减 | 降至 1–0.2 μg/mL |
二、负淘选
1、问题本质
噬菌体展示淘选通过施加选择压力来富集目标结合克隆、耗竭所有其他克隆。但在实际操作中,非特异性结合的噬菌体会持续干扰目标抗体的富集。负淘选的核心目的正是在正选之前,预先去除那些与非靶标分子结合的噬菌体,大幅提升正选的效率和特异性。
2、负靶标选择策略
表2:负靶标选择策略类型
负靶标类型 | 适用场景 | 目的 |
BSA/脱脂牛奶 | 去除封闭剂非特异结合 | 基础净化 |
标签蛋白 | 融合蛋白抗原 | 去除标签结合克隆 |
同源蛋白 | 多成员蛋白家族 | 区分特异性克隆 |
抗原阴性细胞 | 全细胞筛选 | 去除膜蛋白非特异结合 |
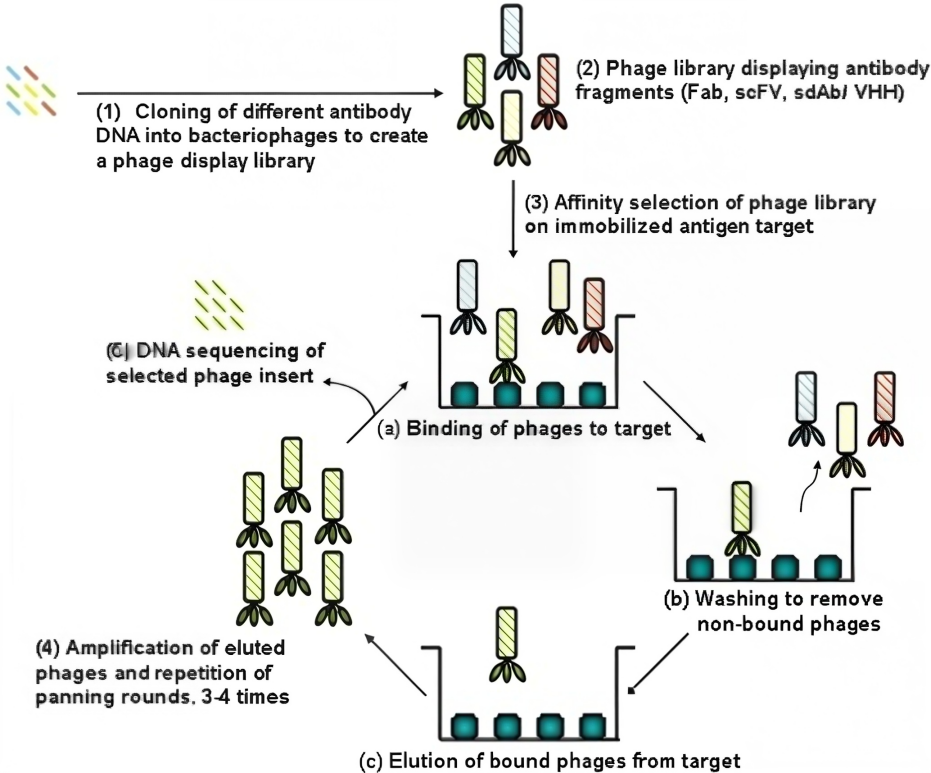
图2:噬菌体展示淘选流程示意图[2]
三、淘选轮数
1、问题本质
生物淘选的轮数直接影响VHH抗体的富集效果。轮数过少,噬菌体库筛选不充分;轮数过多,VHH文库多样性急剧下降,甚至丢失具有独特结合表位的克隆。
2、优化建议
Ø 免疫库:通常3轮淘选即可获得高亲和力VHH。一项针对HPV16 E7的研究中,3轮生物淘选后即获得了高亲和力VHH
Ø 天然/合成库:通常需要3–4轮
Ø 全细胞筛选:有研究进行了多达8轮的选择
四、洗脱严苛度
1、问题本质
洗脱是生物淘选过程中将结合噬菌体从靶标上回收的关键步骤。洗脱方式的选择直接影响回收噬菌体的活性、多样性及后续扩增效率。VHH抗体因其结构极其稳定,可承受比scFv更严苛的洗脱条件,这是其在噬菌体库筛选中的核心优势之一。
2、优化建议
表3:洗脱调控策略
洗脱方式 | 机制 | 优点 | 缺点 |
酸性洗脱 | 低pH破坏蛋白-抗原相互作用 | 通用性强 | 可能损伤部分克隆活性 |
胰蛋白酶洗脱 | 切割噬菌体蛋白 | 对VHH结构损伤小 | 需要灭活胰蛋白酶 |
竞争性洗脱 | 游离抗原结合位点 | 富集真正的功能性克隆 | 需要消耗较多抗原,且操作步骤相对繁琐 |
五、抗原投入量
1、问题本质
在VHH抗体的噬菌体库筛选中,抗原投入量直接决定生物淘选的“选择性压力”。高投入量保留VHH多样性但亲和力压力小;低投入量施加高亲和力选择压力但可能丢失低丰度VHH抗体克隆。
2、优化建议
Ø 首轮(保多样性) :投入100–200 pmol抗原
Ø 末轮(逼亲和力) :投入10–20 pmol抗原
需要注意的是,VHH因分子量小(~15 kDa),与抗原的结合stoichiometry与传统抗体不同。当抗原分子量较小时(如<30 kDa),需要适当提高投入量以确保足够的结合表位暴露。
六、洗脱条件
1、问题本质
洗涤是生物淘选过程中最具决定性的步骤——直接决定了噬菌体库筛选中非特异性噬菌体被去除的程度,以及高亲和力VHH抗体克隆被保留的效率。VHH抗体因其结构极其稳定,可承受比scFv更严苛的洗涤条件,这是其在噬菌体库筛选中的核心优势之一。
2、优化建议
表4:洗脱方式优化建议
洗脱方式 | 机制 | 优点 | 缺点 |
酸性洗脱 | 低pH破坏蛋白-抗原相互作用 | 通用性强 | 可能损伤部分克隆活性 |
胰蛋白酶洗脱 | 切割噬菌体蛋白 | 对VHH结构损伤小 | 需要灭活胰蛋白酶 |
竞争性洗脱 | 游离抗原结合位点 | 富集真正的功能性克隆 | 需要消耗较多抗原,且操作步骤相对繁琐 |
七、宿主菌选择
1、问题本质
在噬菌体库筛选中,噬菌粒需要转入宿主菌才能进行噬菌体包装和扩增。不同宿主菌的转化效率和噬菌体包装能力差异显著,直接影响VHH文库的代表性和生物淘选产物的回收率[4]。
2、优化建议
Ø TG1:最广泛使用的VHH噬菌体展示宿主,电转效率高
Ø SS320:适合大容量文库的电转
Ø CM13K胰蛋白酶敏感型辅助噬菌体:可用于需要胰蛋白酶洗脱的方案
八、Input文库拷贝数
1、问题本质
在噬菌体库筛选的每一轮生物淘选中,Input噬菌体的数量决定了VHH文库的多样性是否被充分代表。
2、调控策略
每轮生物淘选的Input噬菌体数量应至少为VHH抗体文库库容的10倍。
VHH抗体文库的高效筛选,本质上是一门8个参数协同调控的艺术。从抗原包被密度、负淘选、淘选轮数、洗涤严苛度、抗原投入量、洗脱条件、宿主菌选择到Input拷贝数——每一个参数都值得在项目启动前仔细评估、在筛选过程中逐轮优化。通过逐轮优化洗涤条件,可以在保留高亲和力克隆的同时有效去除背景结合,是淘选成功的关键保障。
卡梅德生物在VHH抗体文库筛选的每一个关键参数环节均有对应的技术平台和服务能力,能够为客户提供从抗原设计、动物免疫、文库构建与筛选、到功能验证的一站式VHH抗体发现服务。严格执行动态调控策略:依据靶点特性、文库类型和客户终用场景,为每个项目量身定制最优组合方案,避免客户在参数摸索上浪费宝贵的时间。
[1]Muyldermans S. Nanobodies: natural single-domain antibodies. Annu Rev Biochem. 2013;82:775-97. doi: 10.1146/annurev-biochem-063011-092449. Epub 2013 Mar 13. PMID: 23495938.
[2]Yun YH, Eteshola E, Bhattacharya A, Dong Z, Shim JS, Conforti L, Kim D, Schulz MJ, Ahn CH, Watts N. Tiny medicine: nanomaterial-based biosensors. Sensors (Basel). 2009;9(11):9275-99. doi: 10.3390/s91109275. Epub 2009 Nov 19. PMID: 22291565; PMCID: PMC3260642.
[3]Qian M, Xiao S, Yang Y, Yu F, Wen J, Lu L, Wang H. Screening and identification of cyprinid herpesvirus 2 (CyHV-2) ORF55-interacting proteins by phage display. Virol J. 2023 Apr 12;20(1):66. doi: 10.1186/s12985-023-02026-x. PMID: 37046316; PMCID: PMC10091560.
[4]Eyssen, L. E. A., Ramadurai, S., Abdelkarim, S., Buckle, I., Cornish, K., Lin, H., Jones, A. K., Stephens, G. J. and Owens, R. J. (2024). From Llama to Nanobody: A Streamlined Workflow for the Generation of Functionalised VHHs. Bio-protocol 14(6): e4962. DOI: 10.21769/BioProtoc.4962.
FAQs
Q1:为什么“洗涤”环节如此关键,甚至被称为最具决定性的步骤?
在“吸附-洗涤-洗脱-扩增”的循环中,洗涤环节的目标是去除那些与靶标结合弱、甚至没有特异性结合的噬菌体。通过不断加大洗涤的“力度”,比如增加洗涤次数、提高缓冲液中的表面活性剂(如Tween-20)浓度、延长每次洗涤的时间,就能逐步提升筛选的“门槛”
Q2:VHH的CDR3 loop对抗原结合贡献最大,这对抗原包被密度有什么特殊要求?
VHH仅靠CDR3 loop介导大部分抗原接触,意味着它的结合足迹比传统抗体小得多。VHH的CDR3 loop可呈现Upright、Half-Roll和Roll三种构象,不同构象决定了纳米抗体与靶点相互作用的方式。基于这一结构特征,对抗原包被密度的特殊要求体现在:
Ø 包被密度过高会遮蔽CDR3的结合位点。 当抗原分子在固相表面密集排列时,相邻抗原之间的空间位阻可能直接阻挡VHH的CDR3 loop接近其表位。因此VHH筛选的抗原包被密度通常应低于scFv或Fab筛选。
Ø 包被密度过低则可能丢失低丰度克隆。 VHH的CDR3 loop长而灵活,能触及传统抗体无法到达的凹陷表位或构象表位。但如果抗原密度太低,这些高特异性但低丰度的VHH克隆可能根本没有机会与抗原接触。
Ø 首轮5-10 μg/mL、后轮降至1-0.2 μg/mL的密度范围通常适用于分子量在30-100 kDa之间的可溶性蛋白抗原。对于小分子抗原(<10 kDa,如半抗原、多肽),由于单个抗原分子的表位数量有限,可能需要更高的包被密度(如10-20 μg/mL)来确保足够的结合位点暴露;对于大分子抗原(>150 kDa),则可适当降低密度以避免空间位阻。
Q3:“逐轮递减抗原包被密度”和“逐轮递增洗涤严苛度”同时执行时,如何判断哪个参数出了问题?
这两个参数对O/I比值的影响方向不同,可通过以下方法区分问题来源:
Ø 监控洗脱液的绝对滴度而非仅看O/I比值。 如果抗原包被密度降得太低,洗脱液的绝对噬菌体数量会显著下降(低于10⁴-10⁵ CFU);而如果只是洗涤太严苛,洗脱液的绝对数量可能正常,但后续扩增后的O/I比值不升。
Ø 设置“中间监测指标”——洗涤后残留噬菌体的比例。 可以在每次洗涤后取少量洗涤液测定滴度,观察逐轮洗涤过程中噬菌体的脱落曲线。如果某轮洗涤中早期洗涤液(前3次)中脱落的噬菌体异常多,提示抗原包被可能不足;如果晚期洗涤液(后几次)中仍在大量脱落,提示洗涤可能过严。
Ø 参考典型数据范围。 CD19特异性VHH的筛选中,O/I比值从第1轮的7×10⁻⁶逐轮提升至第5轮的1.37×10⁻⁴,富集比达到19.5倍。如果某轮O/I比值相比上一轮无提升甚至下降,且Input数量正常,应优先考虑降低抗原包被密度(而非调整洗涤严苛度),因为洗涤严苛度通常只在连续两轮O/I比值无提升时才需要上调。
Q4:全细胞筛选和纯化蛋白筛选在参数调控上有哪些关键差异?
全细胞筛选与纯化蛋白筛选在8个参数的调控上存在系统性差异:
Ø 抗原“包被密度”无法精确控制。 细胞表面的抗原表达水平由细胞系决定,无法像纯化蛋白那样精确调整。解决方案是选择不同表达水平的细胞系(高表达vs低表达),或通过抗体标记结合流式细胞术定量细胞表面抗原密度。
Ø 负淘选更为关键。 全细胞筛选中,噬菌体面临的非特异性结合来源极为复杂(细胞膜成分、培养基成分、细胞碎片等)。因此必须设置抗原阴性细胞作负选对照。有研究采用“负选细胞→正选细胞”串联模式重复4轮。
Ø 淘选轮数更多。 全细胞筛选的噪音更高,通常需要更多轮次才能实现有效富集——有研究进行了多达8轮。
Ø 洗涤策略不同。 全细胞筛选中不能使用高浓度去垢剂(会破坏细胞完整性),洗涤严苛度主要通过增加洗涤次数(而非提高Tween-20浓度)来实现。
Ø 洗脱方式不同。 全细胞筛选常采用酸和碱两步洗脱,以最大化回收结合在不同细胞表面区域的噬菌体。
Q5:NGS如何与传统的淘选参数调控结合使用?
NGS可以作为传统淘选参数调控的“显微镜”——不仅看到“富集了多少”(O/I比值),还能看到“富集了什么”(序列层面的动态)。
NGS数据指导参数调整的具体方式:
Ø 监测多样性损耗速率。 如果NGS显示某轮淘选后独特CDR3序列数从10⁴骤降至10²(多样性急剧下降),说明当前轮次的筛选压力(可能是洗涤严苛度过高或抗原投入量过低)过于严苛,应在下一轮降低洗涤严苛度或增加抗原投入量以“挽救”多样性。
Ø 识别早期富集信号。 NGS可以在第1轮淘选后就检测到某些序列家族的频率开始上升——这种“早期富集信号”可以指导第2轮参数的调整方向。如果某家族在第1轮已显著富集,第2轮可适当增加严苛度以加速其纯化。
Ø 区分“真阳性”与“扩增偏好”。 某些序列可能因为PCR扩增效率高而非结合能力强而被富集——NGS可以检测这种“扩增偏好”。如果某个序列在淘选各轮中的丰度变化与O/I比值变化趋势不一致,应警惕扩增偏好的可能性。
Ø 指导淘选终止时机。 当NGS显示某轮淘选后,Top 10序列家族占总序列的80%以上,且后续轮次的序列组成不再发生显著变化时,说明淘选已达到收敛,可以终止。
NGS辅助筛选的工作流程:
第1轮淘选 → 取Output样品送NGS(同时继续第2轮)→ NGS数据分析(约5-7天)→ 根据NGS结果调整第3轮参数 → 第3轮淘选 → 再次NGS验证 → 淘选终止
- 联系我们
- 电话:400-621-6806
- 手机:13116038708(微信)
- 邮箱:info@kmdbioscience.com
- 地址:天津市武清开发区和畅路6号10号厂房108室
-
销售微信
-
官方公众号
-
 400-621-6806
-
 3599163699
-
 周一至周五 9:00-18:00
-

-
 0
-
